软件

产品


我想带你经历一下无意义介导衰变的发现过程会很有趣。
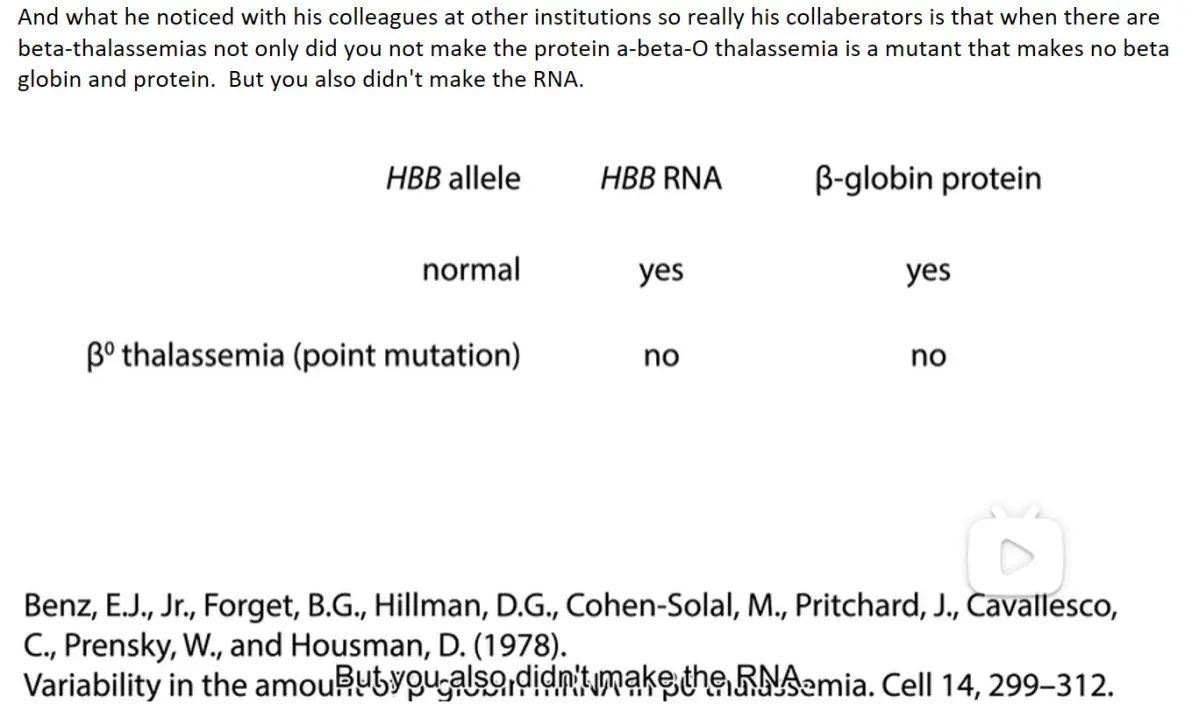
他和其他机构的同事们注意到,当出现β-地中海贫血时,你不仅没有制造出α-β-O地中海贫血蛋白,而是一种不制造β-珠蛋白和蛋白质的突变体。但你也没有制造RNA。
这是令人困惑的,因为他们没有根据各种分析认为这些是删除。他们认为有某种点突变。因此,当你有点突变时,为什么你不能产生mRNA,这很令人困惑。如果编码序列只有一两个变化,它怎么知道它不是正确的mRNA?所以他们继续研究,尤其是这个。

几年后,苏珊·伯瑟加和爱德华·本茨。这是在1988年。实际上,在两者之间,这是1978年。这次和这次的最大区别是他们可以对基因进行测序。他们也许能做点什么。但到目前为止,每个人都可以对自己的基因进行测序。
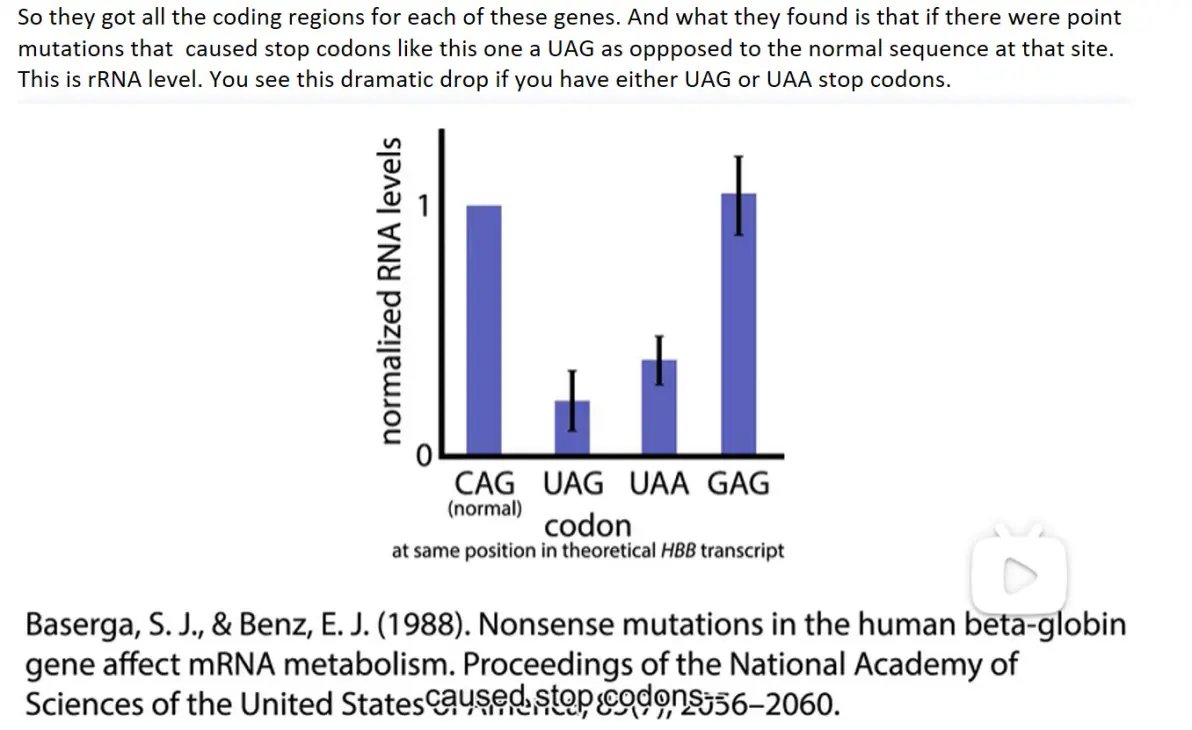
所以他们得到了这些基因的所有编码区。他们发现,如果有点突变导致了像这样的终止密码子,那么UAG与该位点的正常序列相反。
但如果你有GAG,你就看不到。他们一直看到的是,如果他们有一个非野生型终止密码子,你显然看到了蛋白质片段,但你也看到了mRNA水平大大下降。
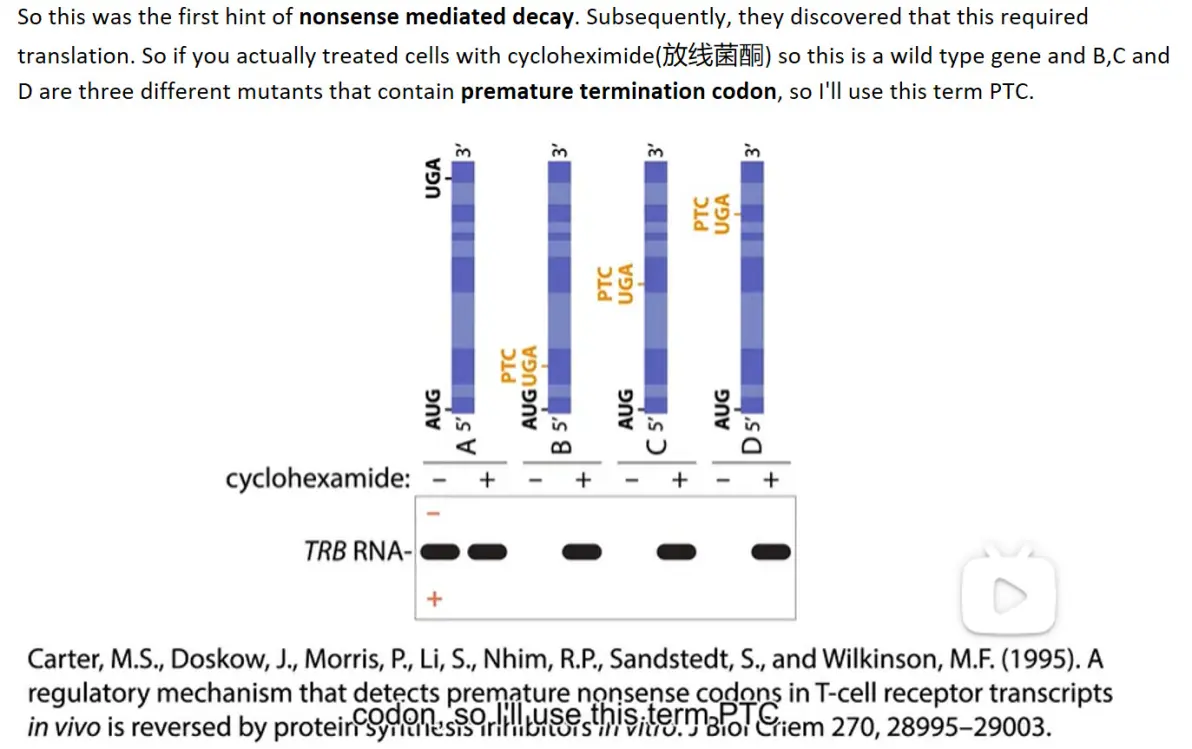
所以这是无意义介导衰变的第一个线索。随后,他们发现这需要翻译。如果你真的用环己酰亚胺(又称放线菌酮)处理细胞, 这是一个野生型基因,B、C和D是三种不同的突变体,它们含有过早终止密码子,所以我将使用这个术语PTC。
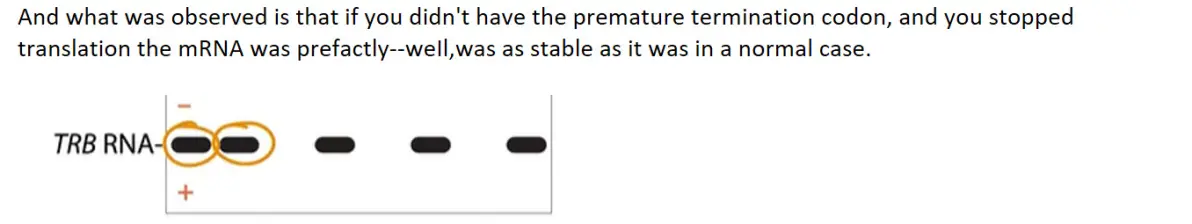
观察到的是,如果你没有提前终止密码子,并且你停止了翻译,那么mRNA就很简单了,就像正常情况下一样稳定。
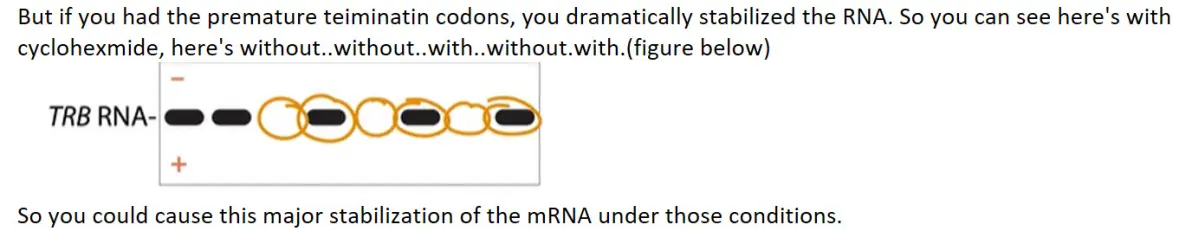
但如果你有过早的蛋白密码子,你就会显著稳定RNA。所以你可以看到这里有环己酰亚胺,这里没有……没有,有,没有,有。

因此,在这一点上,非常清楚的是,如果存在过早终止密码子,则存在翻译依赖性机制来驱动mRNA的丢失。然后他们变得聪明了。他们绘制了剪接位点图,他们发现剪接在某种程度上参与了其中。
现在,关于拼接,有一件事很有趣,那就是在大多数情况下,我确信有例外,但在大多数情况中,最后一个内含子与编码区重叠。很少有,如果有的话,内含子只在3'UTR中。因此,这可能是上游的事情。
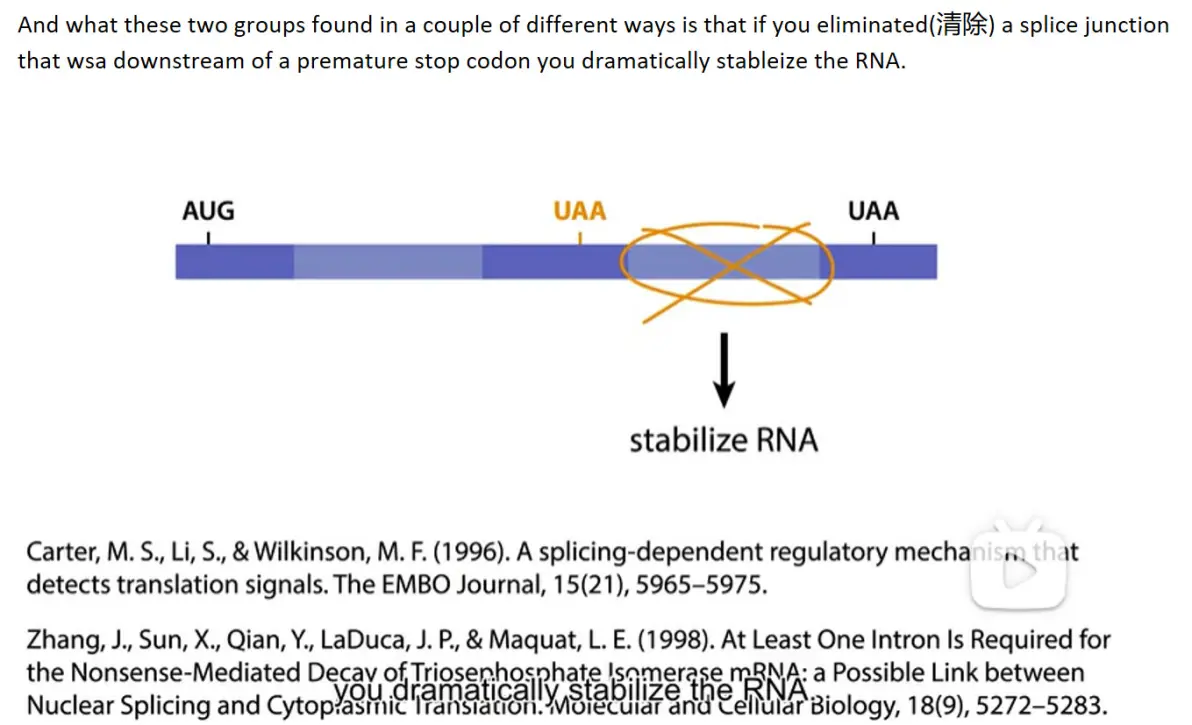
这两个小组以两种不同的方式发现的是,如果你消除了一个位于过早终止密码子下游的剪接连接,你就会显著稳定RNA。
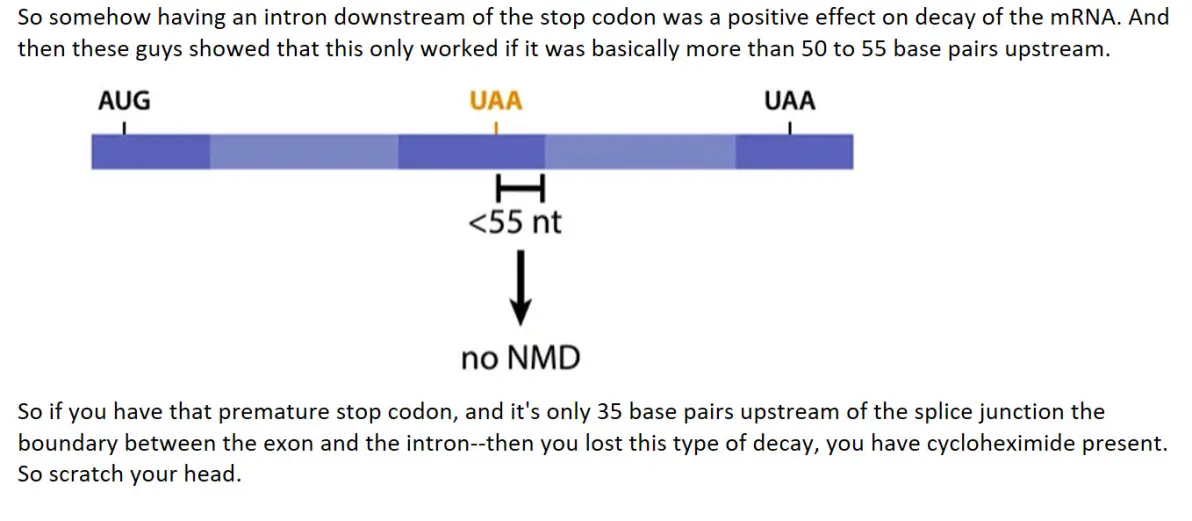
所以在终止密码子下游有一个内含子对mRNA的衰变有积极的影响。然后这些人表明,只有当上游基本上超过50到55个碱基对时,这才有效。
这是什么意思?所以这表明——因为这一切都在进行,衰变发生在细胞质中。但剪接发生在细胞核中。因此,剪接过程以某种方式直接影响衰变的机制没有多大意义。
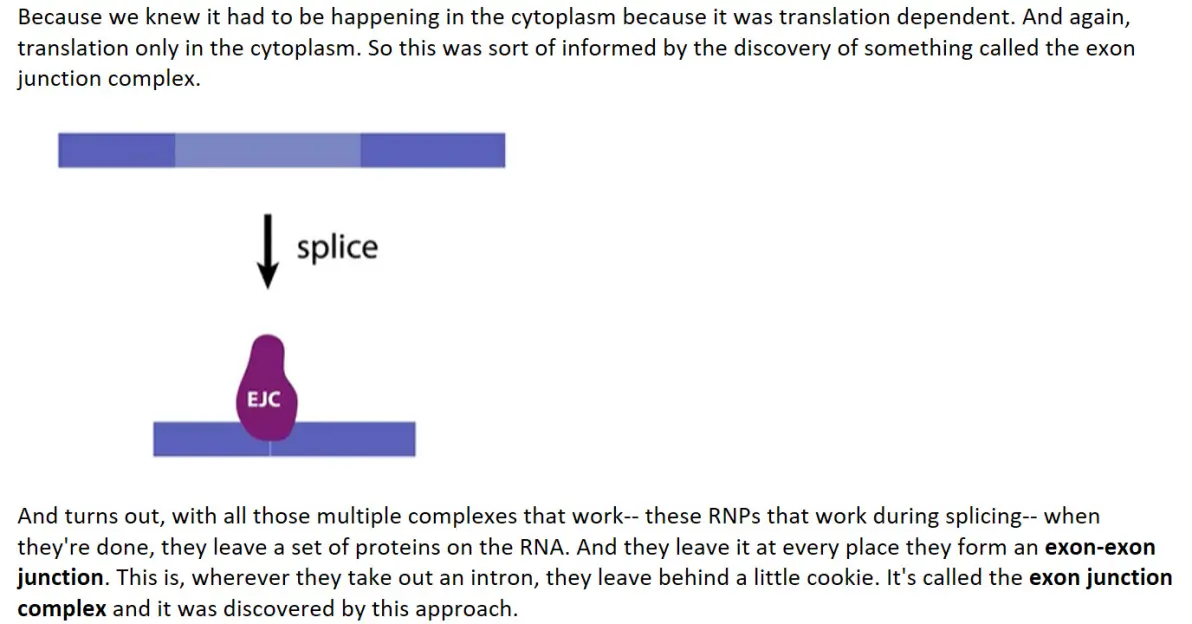
因为我们知道它(RNA降解)必须发生在细胞质中,因为它依赖于翻译。同样,翻译只在细胞质中进行。因此,这是一种被称为外显子连接复合物的发现所提供的信息。
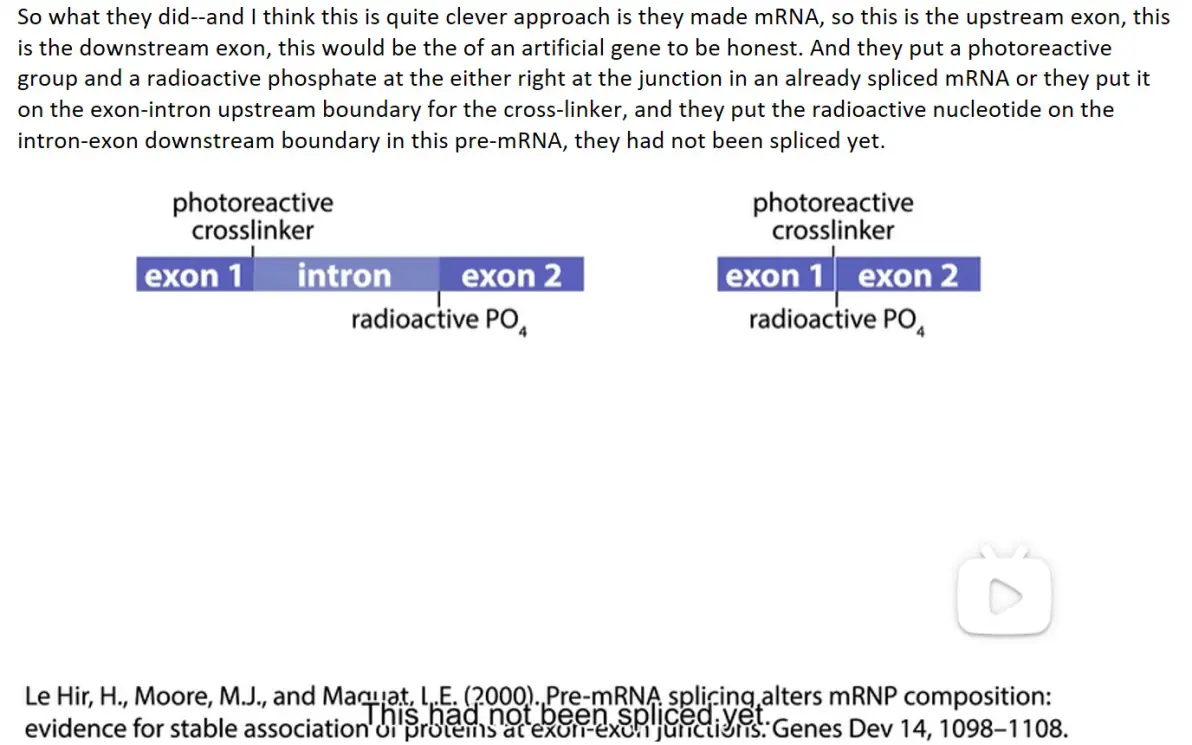
所以他们做了什么——我认为这是一个非常聪明的方法,他们制造了mRNA,所以这是上游外显子,这是下游外显子。他们将一个光敏基团和一个放射性磷酸盐放在已经剪接的mRNA的连接处的右侧,或者将其放在外显子-内含子上游边界上,作为交叉接头,他们将放射性核苷酸放在这个前mRNA的内含子-外显子下游边界上,他们还没有被剪接。
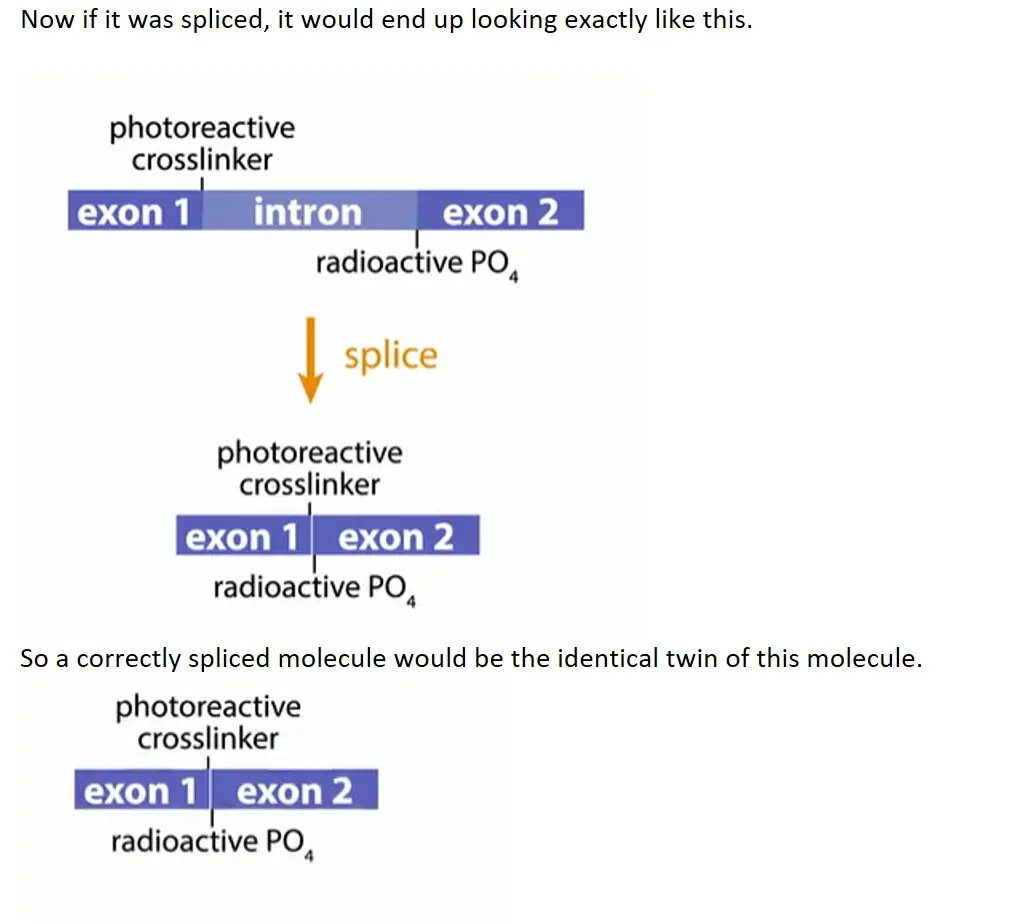
现在,如果它是拼接的,它最终会看起来像这样。
顺便说一句,这都是在HeLa提取物中完成的。原来你可以做拼接一 有人知道HeLa细胞是什么吗?
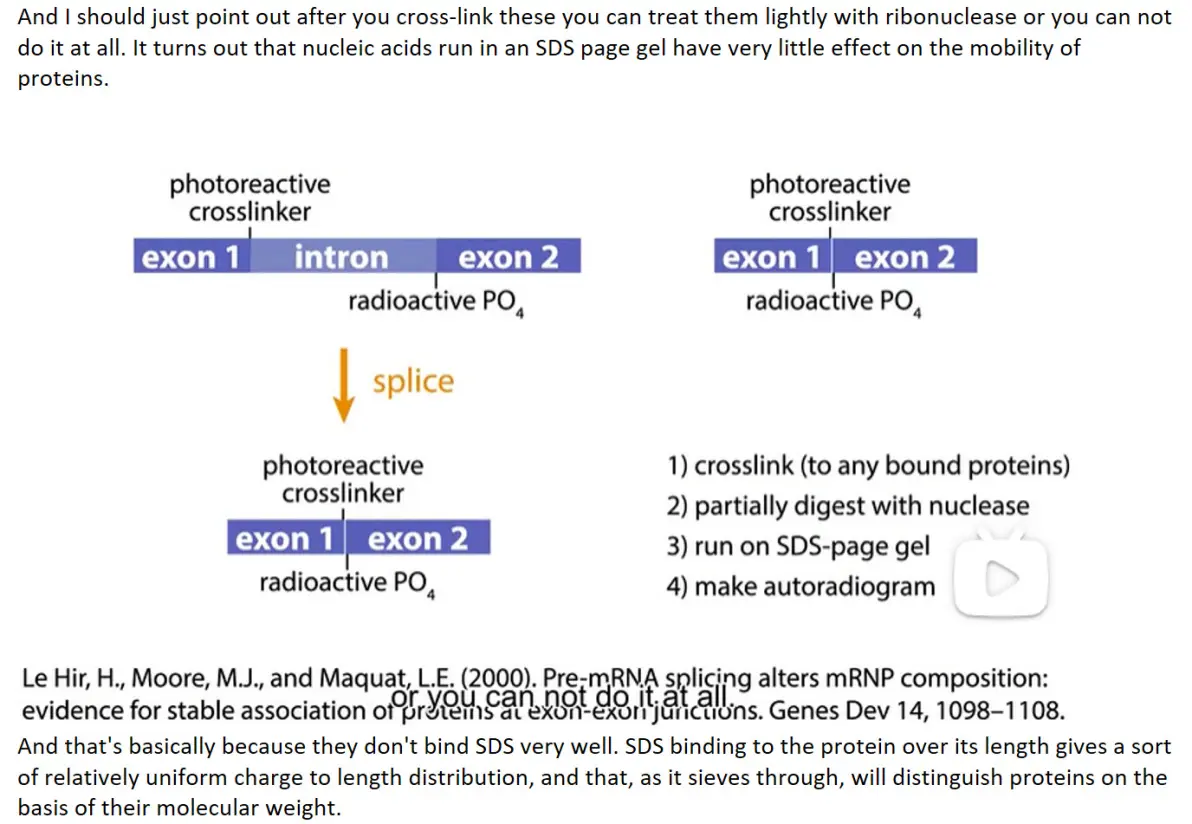
我要指出的是,在你交叉连接这些基因后,你可以用核糖核酸酶轻处理它们,或者你根本不能这样做。结果表明,在SDS-PAGE凝胶中运行的核酸对蛋白质的迁移速率几乎没有影响。
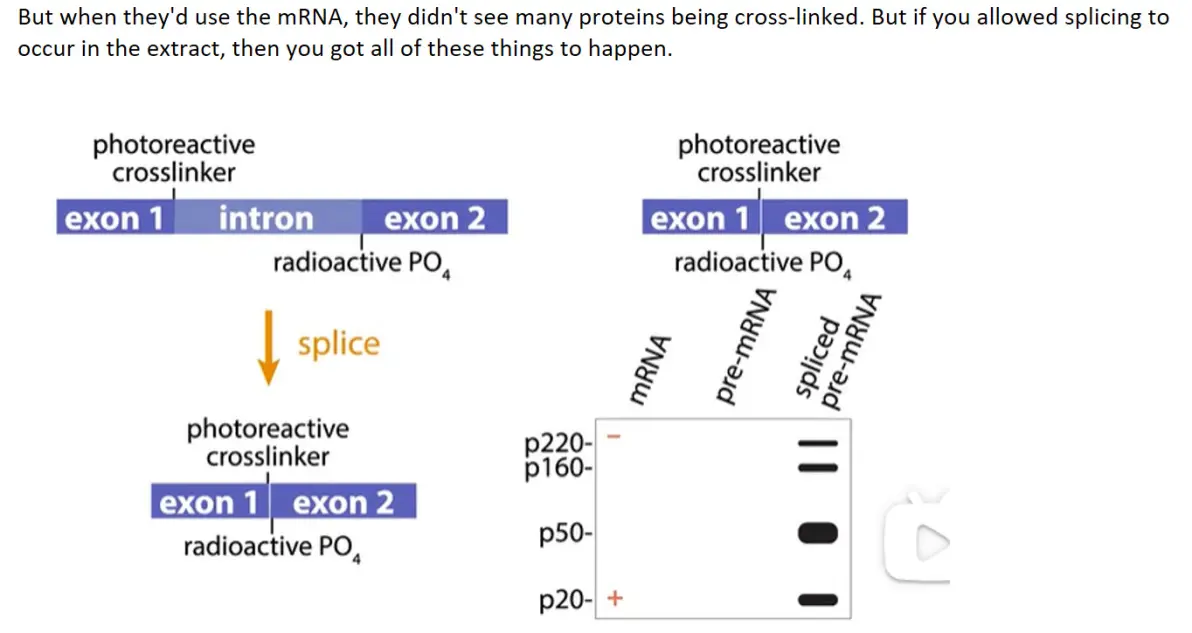
但当他们使用mRNA时,他们没有看到许多蛋白质被交联。但如果你允许剪接发生在摘录中,那么你就得到了所有这些事情的发生。
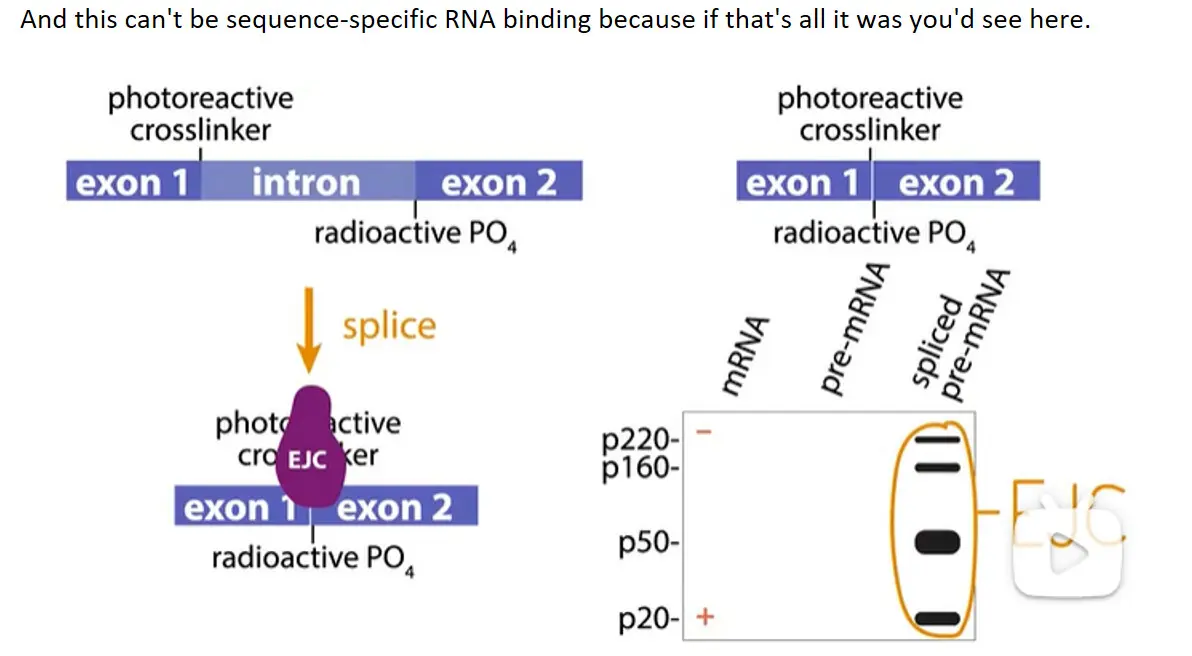
这不可能是序列特异性RNA结合,因为如果这就是你在这里看到的全部。
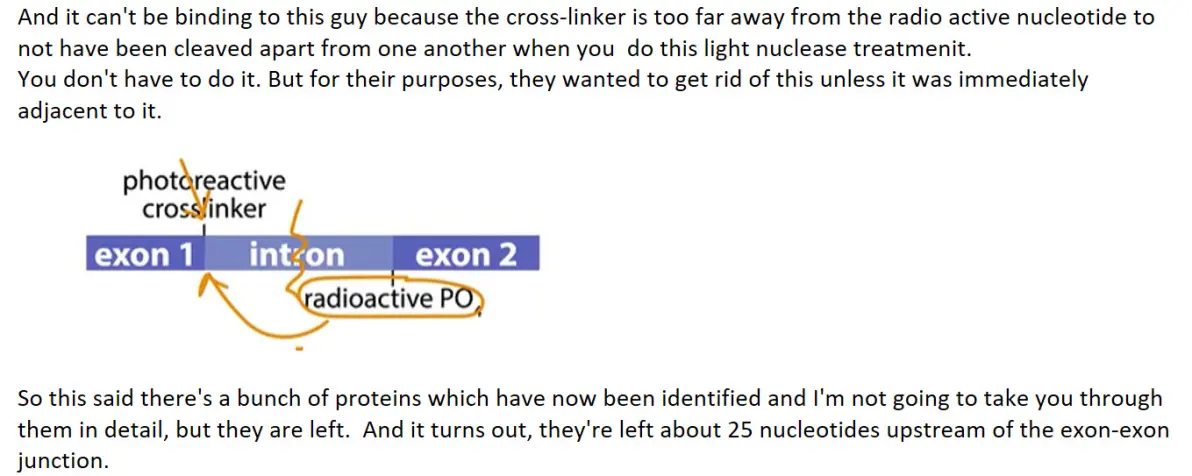
它不可能与这家伙结合,因为当你进行这种光核酸酶处理时,交联剂离放射性核苷酸太远,无法彼此分离。
免责声明:本文系网络转载或改编,未找到原创作者,版权归原作者所有。如涉及版权,请联系删
 技术文档
 推荐好文


 155-2731-8020